القطع النظيف الذي يخلق تفاعلاً صعباً
قد تصل قطعة من الحمض النووي إلى مرحلة الربط وهي تبدو مجهزة تماماً: كلا الشريطين سليم، والنهايات نظيفة، والتسلسل مطابق تماماً لما يتطلبه سير العمل.
ومع ذلك، قد يفشل التفاعل.
غالباً ما يكمن السبب في هندسة طرف الحمض النووي. تنتهي القطعة ذات النهاية غير المتداخلة بدقة عند زوج قاعدي. ولا يوجد ذيل أحادي الشريط يمتد إلى ما بعد اللولب المزدوج، ولا ازدواج قاعدي مؤقت، ولا إشارة مدمجة تُخبر إحدى نهايتي الحمض النووي بكيفية العثور على شريكتها.
القطع نظيف.
لكن الكيمياء ليست كذلك.
يهم هذا التمييز في تحضير مكتبات التشخيص، وتطوير الضوابط الإيجابية المؤتلفة، وإنشاء النواقل. ففي كل تطبيق، قد تعتمد موثوقية الاختبار اللاحق على قدرة إنزيم الربط على تحويل تصادم جزيئي منخفض الاحتمال إلى رابطة فوسفوديستر مستقرة.
ما الذي يعنيه الحمض النووي ذو النهايات غير المتداخلة فعلياً
نهاية لولب مزدوج متساوية
تتكون النهاية غير المتداخلة عندما ينتهي شريطا لولب الحمض النووي المزدوج عند الموضع نفسه من النيوكليوتيد.
ويحتوي التركيب الناتج على:
- قطعة حمض نووي مزدوجة الشريط من دون بروز
- مجموعة فوسفات 5' على أحد الشريطين
- مجموعة هيدروكسيل 3' على الشريط المقابل
- عدم وجود نيوكليوتيدات غير مزدوجة متاحة للازدواج القاعدي المؤقت
من الناحية البنيوية، هو بسيط. أما وظيفياً، فهو لا يتسامح مع الأخطاء.
وعلى النقيض من ذلك، تحتوي النهايات اللاصقة على بروزات أحادية الشريط متكاملة. ويمكن لهذه البروزات أن تتعرف على بعضها وتتهجن لفترة وجيزة قبل أن يكمل الإنزيم تكوين الرابطة. وتساعد جزيئات الحمض النووي فعلياً على تموضع نفسها.
أما الجزيئات ذات النهايات غير المتداخلة فلا تحظى بهذا النوع من المساعدة.
غياب التوجيه الجزيئي
في النهايات اللاصقة، يخلق التكامل التسلسلي درجة من الانتقائية. أما في النهايات غير المتداخلة، فيمكن لأي نهاية غير متداخلة متوافقة تقريباً أن تنضم إلى نهاية أخرى.
قد تكون هذه اللاخصوصية مفيدة، لكنها قد تكون خطيرة أيضاً.
في مكتبة التسلسل، قد يكون الهدف هو ربط محولات عامة بمجموعة متنوعة من قطع الحمض النووي. ويكون الانضمام غير النوعي مرغوباً لأن سير العمل يجب أن يعامل العديد من التسلسلات المختلفة بالتساوي.
أما في إنشاء البلازميدات، فقد تؤدي اللاخصوصية إلى تكوين نواتج غير مرغوبة. فقد تنضم الإدخالات إلى بعضها، وقد تعيد النواقل تكوين حلقاتها، وقد تتشكل تكرارات ترادفية.
لذلك يمكن أن تكون الخاصية الفيزيائية نفسها ميزة في أحد مسارات العمل ومصدراً للخلفية في مسار آخر.
لماذا يصبح الربط مشكلة حركية
لا يمثل ربط النهايات غير المتداخلة مجرد نسخة أقل ملاءمة من ربط النهايات اللاصقة، بل يتبع مسار تفاعل أكثر صعوبة.
ولحدوث ربط ناجح، يجب على الإنزيم أن:
- يواجه نهايتي حمض نووي تنتشران بحرية.
- يحتجز الجزيئين معاً قبل أن ينفصلا.
- يضع النهايتين في الهندسة الصحيحة.
- ينشط طرفي الحمض النووي.
- يحفز تكوين رابطة الفوسفوديستر.
- يحرر ناتجاً منضماً من دون إدخال تباين في العملية.
تقلل النهايات اللاصقة العبء في العديد من هذه الخطوات، لأن القواعد المتكاملة تساعد على إبقاء القطع معاً.
أما النهايات غير المتداخلة فلا تبقى مرتبطة. لذلك يجب على الإنزيم أن يوفر جزءاً كبيراً من وظيفة التمَوضع بنفسه. ونتيجة لذلك، يكون التفاعل أبطأ وأكثر اعتماداً على تركيز إنزيم الربط ونقاوته ونشاطه الجوهري.
ولهذا السبب، فإن إنزيم T4 DNA Ligase عالي النشاط ليس مجرد خيار مريح للكاشف، بل هو استجابة للحركية الأساسية للركيزة.
دور إنزيم T4 DNA Ligase عالي النشاط
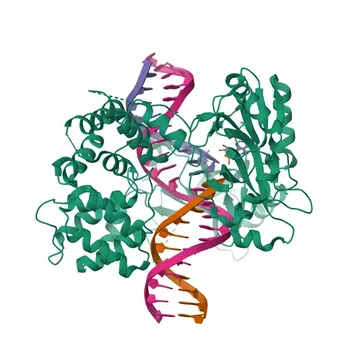
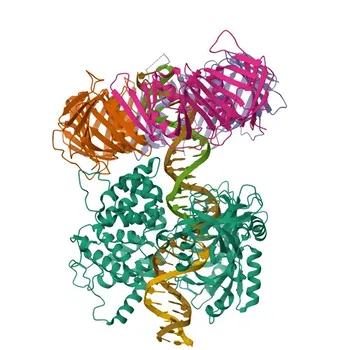
يحفز إنزيم T4 DNA Ligase انضمام قطع الحمض النووي من خلال تكوين رابطة فوسفوديستر تساهمية بين فوسفات 5' وهيدروكسيل 3' مجاور.
في مسارات العمل ذات النهايات غير المتداخلة، يجب على الإنزيم أن يعمل ضد مواجهة ضعيفة التفضيل بين نهايتي الحمض النووي. ويزيد النشاط العالي احتمال تحول التصادمات العابرة إلى أحداث ربط منتجة.
ويترتب على هذا التحسن عدة نتائج عملية:
- ربط أكثر اكتمالاً خلال فترة حضانة محددة
- استرداد أفضل لجزيئات المكتبة القابلة للاستخدام
- زيادة إنتاجية المستعمرات المؤتلفة
- تقليل الاعتماد على استكشاف الأخطاء وإصلاحها بشكل متكرر
- اتساق أكبر بين العينات ودفعات الإنتاج
لكن النشاط وحده لا يكفي. إذ تتطلب مسارات العمل التشخيصية أيضاً النقاوة وقابلية التكرار. فقد يؤدي إنزيم ذو نشاط اسمي قوي ولكن بأداء غير متسق بين الدفعات إلى تغيير كفاءة الربط من عملية تصنيع إلى أخرى.
وبالنسبة إلى المنتجات الخاضعة للتنظيم، لا يمثل هذا التباين مجرد إزعاج بسيط، بل قد يتحول إلى مشكلة توثيق أو خطر على الإطلاق أو تهديد مباشر لتوافر مواد التحكم.
النهايات غير المتداخلة في تحضير مكتبات التسلسل من الجيل التالي (NGS)
يوضح تحضير مكتبات التسلسل من الجيل التالي سبب كون ربط النهايات غير المتداخلة صعباً تقنياً وذا قيمة استراتيجية في الوقت نفسه.
غالباً ما تتم معالجة الحمض النووي المجزأ من خلال إصلاح النهايات. والهدف هو إنتاج نهايات ذات بنية محددة، تشمل عادةً نهايات غير متداخلة وفوسفرة 5'. وبعد توحيد بنية القطع، يمكن ربط محولات التسلسل بها.
في هذه المرحلة، يؤدي فقدان كل قطعة إلى تغيير المكتبة.
ربط موحد للمحولات
ينبغي أن تحافظ مكتبة التشخيص على أكبر قدر ممكن من تعقيد العينة الأصلي. فإذا رُبطت بعض القطع بكفاءة بينما لم تُربط قطع أخرى، فقد لا تعود المكتبة الناتجة ممثلة لمجموعة الحمض النووي الأصلية.
وقد تشمل العواقب:
- تغطية جينومية غير متساوية
- زيادة انحياز التسلسل
- انخفاض اكتشاف الأهداف منخفضة الوفرة
- زيادة خطر فقدان الأليل
- انخفاض الحساسية بالقرب من حد الكشف في الاختبار
يساعد إنزيم الربط عالي النشاط وعالي النقاوة على زيادة عدد القطع التي تتلقى المحولات. وهو لا يلغي كل مصادر الانحياز، لكنه يعزز إحدى أكثر خطوات سير العمل تأثيراً.
مشكلة ثنائيات المحولات
يمكن للكيمياء غير النوعية نفسها التي تساعد على ربط المحولات بقطع العينة أن تسمح أيضاً بربط المحولات بعضها ببعض.
تستهلك ثنائيات المحولات قدرة التسلسل من دون أن تضيف معلومات مفيدة عن العينة. كما قد تعقد عملية التنقية وتقلل نسبة جزيئات المكتبة المنتجة.
ولا يكمن الحل ببساطة في إضافة المزيد من الإنزيم. إذ يجب على العملية المتينة أن توازن بين:
- تركيز المحولات
- كمية الحمض النووي المدخلة
- النسب المولية
- مدة التفاعل
- نشاط الإنزيم
- استراتيجية التنقية
- إزالة النواتج القصيرة غير المرغوبة
إنزيم الربط عنصر محوري، لكنه يعمل ضمن منظومة. ويأتي الأداء الجيد للمكتبة من التحكم في بيئة التفاعل بأكملها.
إنشاء النواقل ذات النهايات غير المتداخلة والضوابط الإيجابية
يظهر التحدي بصورة مختلفة عند إنشاء ضبط إيجابي مؤتلف لاختبار تشخيصي قائم على تفاعل PCR.
قد تحتوي قطعة حمض نووي اصطناعية على التسلسل المستهدف اللازم لتمثيل ممرض أو طفرة أو مادة تحليلية. ويجب إدخال هذه القطعة في ناقل بلازميدي حتى يمكن تضخيمها وقياسها وتثبيتها وإدراجها في عملية اختبار مضبوطة.
لا يؤدي فشل الربط إلى إهدار أنبوب تفاعل فحسب، بل قد يؤخر التحقق ويمدد الجداول الزمنية للتطوير ويسبب نقصاً في مواد التحكم الموثوقة.
زيادة إنتاجية المؤتلفات الصحيحة إلى أقصى حد
بما أن النهايات غير المتداخلة لا توفر ازدواجاً اتجاهياً، فغالباً ما يتطلب التفاعل تحسيناً مدروساً.
وتشمل الاعتبارات الشائعة:
- استخدام فائض مولي من الإدخال مقارنة بالناقل
- الحفاظ على تركيز مناسب للحمض النووي
- تمديد الحضانة عند الضرورة
- استخدام إنزيم T4 DNA Ligase عالي النشاط
- منع الربط الذاتي للناقل
- الفحص للتحقق من اتجاه الإدخال الصحيح وعدد نسخه
غالباً ما تمثل نسبة مولية للإدخال إلى الناقل تتجاوز 3:1 نقطة بداية مفيدة، رغم أن النسبة المثلى تعتمد على طول القطعة وتركيز الناقل واستراتيجية الإنشاء المحددة.
لا يتمثل الهدف في إجبار كل جزيء على الدخول في ناتج، بل في تحويل توزيع الاحتمالات نحو البنية المؤتلفة المرغوبة.
التحكم في السلاسل المتعددة
قد ترتبط الإدخالات ذات النهايات غير المتداخلة ببعضها قبل أن تواجه الناقل. وقد تكون النتيجة سلسلة متعددة: ترتيب ترادفي لتسلسلات إدخال متكررة.
تكون السلاسل المتعددة مزعجة بشكل خاص عندما يتطلب الضبط الإيجابي المقصود عدداً محدداً من النسخ أو ترتيباً مستهدفاً واحداً. فقد تؤدي إلى نتائج فحص غامضة وتعقد التوصيف اللاحق.
يمكن أن يقلل نزع الفسفرة من الناقل من الربط الذاتي للناقل عبر إزالة فوسفات 5' اللازمة لتكوين الرابطة. كما قد تزيد عوامل التزاحم مثل PEG من التركيز الفعلي لنهايات الحمض النووي وتشجع المواجهات الجزيئية البينية المنتجة.
لا تغير هذه التدخلات الكيمياء الأساسية، بل تغير التفاعلات الأكثر احتمالاً للحدوث.
الموازنة: القوة لا تزيل القيود
يحسن إنزيم الربط عالي النشاط انضمام النهايات غير المتداخلة، لكنه لا يحولها إلى نهايات لاصقة.
وتظل القيود الكامنة قائمة:
| عامل سير العمل | تحدي الحمض النووي ذي النهايات غير المتداخلة | الاستجابة العملية |
|---|---|---|
| التعرف الجزيئي | لا توجد بروزات متكاملة توجه الاقتران | استخدم إنزيم ربط نشطاً وتحكم بعناية في تركيز الحمض النووي |
| سرعة التفاعل | التصادمات المنتجة قليلة نسبياً | حسّن مدة الحضانة وكمية الإنزيم |
| تعقيد المكتبة | قد تُفقد القطع غير المرتبطة | احمِ تنوع المدخلات من خلال ربط المحولات بكفاءة |
| ثنائيات المحولات | قد تنضم المحولات بعضها إلى بعض | حسّن النسب المولية والتنقية |
| خلفية الناقل | قد يربط الناقل نفسه ذاتياً | ضع في الاعتبار نزع الفسفرة من الناقل |
| السلاسل المتعددة | قد تنضم الإدخالات في ترتيب ترادفي | اضبط تركيز الإدخال وافحص النواتج المؤتلفة |
| اتساق التصنيع | قد يؤدي اختلاف الدفعات إلى تغيير الإنتاجية | استخدم إمداداً إنزيمياً معتمداً ومتسقاً بين الدفعات |
هنا تبرز أهمية الحكم التقني. فلا يمكن للكاشف أن يعوض إلى ما لا نهاية عن تصميم تفاعل غير متوازن.
اختيار الإنزيم المناسب للنتيجة المرجوة
يبدأ قرار اختيار إنزيم الربط الأفضل بمتطلبات المنتج، لا بوصف الكتالوج.
لتحضير مكتبات التسلسل من الجيل التالي (NGS)
أعطِ الأولوية لـ:
- نشاط تحفيزي عالٍ
- نقاوة عالية
- انخفاض التلوث بالنوكلياز
- التوافق مع نظام المحلول المنظم والمحول
- أداء متسق عبر أنواع العينات
- استرداد موثوق للمكتبات المعقدة
يسهم الإنزيم هنا مباشرة في تمثيل العينة الأصلية. وقد تصبح الفروق الصغيرة في الكفاءة ذات أهمية بعد التضخيم والتسلسل.
لإنشاء النواقل
أعطِ الأولوية لـ:
- أداء قوي في ربط النهايات غير المتداخلة
- التوافق مع طريقة تحضير الناقل والإدخال
- أداء قابل للتكرار عند تركيز الحمض النووي المقصود
- دعم الفحص والتحسين
- بروتوكول يحد من الربط الذاتي وتكوين السلاسل المتعددة
لا تتمثل النتيجة المرجوة ببساطة في "مزيد من الربط"، بل في جزيئات مجمعة بصورة صحيحة.
للضوابط الإيجابية التشخيصية الخاضعة للتنظيم
أعطِ الأولوية لـ:
- اتساق صارم بين الدفعات
- مواصفات نشاط محددة
- ثبات التركيبة وأداء التخزين
- التوثيق التقني
- استمرارية الإمداد
- دعم التطبيق أثناء تطوير الطريقة ونقلها
يصبح الضبط الإيجابي جزءاً من سلسلة الأدلة في النظام التشخيصي. ولذلك تستحق عملية إنتاجه الانضباط نفسه المطبق على المواد الخام الحرجة الأخرى.
من اختيار الكاشف إلى الموثوقية السريرية
يحتوي المسار من قطعة الحمض النووي إلى النتيجة التشخيصية على العديد من التحولات الصغيرة.
تُصلح قطعة. ويُربط محول. ويُفحص تركيب. ويُقاس ضبط. وتُنقل مجموعة إلى التصنيع. وفي النهاية، يستخدم أحد المختبرات تلك المجموعة لاتخاذ قرار بشأن مريض.
وفي كل انتقال، قد يتراكم التباين.
لا يحل إنزيم T4 DNA Ligase عالي النشاط سير العمل بأكمله، بل يؤدي وظيفة أكثر تحديداً: يجعل خطوة جزيئية صعبة أكثر قابلية للتنبؤ. وتدعم هذه القدرة على التنبؤ تعقيداً أعلى للمكتبة، وإنتاجية أقوى للمؤتلفات، وإنتاجاً أكثر استقراراً لمواد التحكم.
لذلك، فإن السؤال العملي أمام مصنعي التشخيص يتجاوز ما إذا كان الإنزيم يستطيع ربط الحمض النووي.
والأسئلة الأفضل هي:
- هل يمكن تكرار نشاطه من دفعة إلى أخرى؟
- هل تم التحقق من نقاوته للتطبيق المقصود؟
- هل يفهم المورد سير العمل المحيط؟
- هل يمكن أن يستمر الدعم التقني من التطوير المبكر وحتى التصنيع؟
- هل الإمداد موثوق بما يكفي لمنتج خاضع للتنظيم؟
لماذا تهم الشراكة المتكاملة للمواد الخام
بالنسبة إلى المختبرات ومعاهد البحث، قد يكون إنزيم الربط مكوناً واحداً من بين مكونات عديدة.
أما بالنسبة إلى مصنعي التشخيص، فهو جزء من سلسلة أكبر تشمل تأهيل المواد الخام، وتطوير الاختبارات، ونقل العمليات، والتوثيق، واستكشاف الأخطاء وإصلاحها، والتوسع في الإنتاج.
توفر CamelBio لمصنعي التشخيص والمختبرات ومعاهد البحث وصولاً شاملاً إلى المواد الخام الخاصة بالتشخيص المختبري، والخدمات التقنية، والاستشارات. ويمتد دعمها من الفكرة إلى العيادة، ما يساعد الفرق على تقييم الإنزيمات الجزيئية في سياق سير العمل التشخيصي الكامل.
ويهم هذا السياق لأن الحل الأكثر فعالية نادراً ما يكون أقوى كاشف بمعزل عن غيره. بل هو الكاشف والبروتوكول وملف الجودة واستراتيجية الإمداد التي تعمل معاً.
المنظور النهائي
الحمض النووي ذو النهايات غير المتداخلة بسيط بشكل خادع. إذ تزيل هندسته المتساوية التوجيه الجزيئي الذي يجعل ربط النهايات اللاصقة فعالاً.
ويخلق هذا الغياب عائقاً حركياً.
يساعد إنزيم T4 DNA Ligase عالي النشاط على تجاوز هذا العائق من خلال احتجاز المواجهات العابرة للحمض النووي وتحويلها إلى روابط مستقرة. وفي تحضير مكتبات التسلسل من الجيل التالي (NGS)، يدعم ذلك استرداداً واسعاً للقطع وتقليلاً للانحياز. وفي إنشاء النواقل، يحسن احتمال الحصول على الجزيء المؤتلف المقصود، مع ضرورة التحكم الدقيق في النواتج الخلفية.
الدرس الهندسي بسيط: عندما يفتقر النظام إلى المحاذاة الطبيعية، يعتمد الأداء على جودة الآلية التي توفرها.
للحصول على إنزيمات موثوقة، وإرشادات تطبيقية، ودعم للمواد الخام التشخيصية عبر مرحلتي التطوير والتصنيع، ابدأ بـ تواصل مع خبرائنا.
المنتجات ذات الصلة
- جسم مضاد أحادي النسيلة أرنبي مضاد لـ DNA Ligase IV لـ WB، ELISA - P49917
- جسم مضاد متعدد النسائل من الأرنب مضاد لـ DNA Ligase IV للاستخدام في WB وIHC-P وELISA - P49917
- الجسم المضاد متعدد النسائل الأرنبـي Anti-DNA Ligase III/LIG3 لتقنيات WB وIP وELISA - P49916
- مضاد أحادي النسيلة ضد DNA Ligase I لـ WB, IHC-P, IF/ICC, ELISA - P18858
- جسم مضاد متعدد النسائل من الأرنب مضاد لـ DNA Ligase III/LIG3 للاستخدام في WB وIHC-P وIF/ICC وELISA - P49916